小豆芽期耐盐种质资源筛选与耐盐机制分析
王金燕, 石琨, 吕青啡, 袁政, 李晨浩, 张泽燕, 闫建俊, 闫虎斌, 朱慧珺, 郝青婷, 赵雪英, 张耀文, 高伟, 王茜
作物学报
2026, 52 ( 10):
2939-2960.
DOI: 10.3724/SP.J.1006.2026.64051
盐碱地面积的不断扩大对作物生产构成严峻挑战, 挖掘小豆耐盐种质并解析其耐盐分子机制, 对扩大小豆适种区域、保障粮食安全具有重要意义。本研究以110份小豆种质资源为研究对象, 利用隶属函数和主成分分析, 将11个生长指标简化为3个综合指标, 并筛选出耐盐品种东掌小红豆和盐敏感品种特红3号。生理生化指标测定显示, 东掌小红豆在抗氧化和渗透调节能力方面显著优于特红3号。转录组分析发现, 相比对照组, 在盐处理组的东掌小红豆和特红3号中分别鉴定出3801个和7811个差异表达基因。经GO和KEGG分析表明, 这些基因主要参与代谢过程、细胞过程等生物学途径; 结合转录组和qRT-PCR鉴定到3个可能与耐盐相关的基因(LOC108343245、LOC108346293、LOC108331871), 这3个基因主要参与淀粉和糖代谢途径。本研究筛选出小豆耐盐种质, 并推测鉴定到的耐盐基因可能通过参与淀粉和糖代谢途径来调控小豆耐盐, 为培育小豆耐盐新品种和盐碱地利用提供了理论依据。
指标
Indicator | 处理
Treatment | 最小值
Min. | 最大值
Max. | 平均值
Average | 标准差
SD | 变异系数
CV (%) | | GP (%) | CK | 36.70 | 100.00 | 58.67 | 20.43 | 34.81 | | ST | 0 | 56.70 | 2.33 | 7.76 | — | | GR (%) | CK | 83.30 | 100.00 | 95.22 | 4.73 | 4.97 | | ST | 0 | 96.70 | 35.69 | 23.69 | 66.38 | | LRN | CK | 2.00 | 23.00 | 10.76 | 4.01 | 37.27 | | ST | 0 | 4.00 | 0.10 | 0.56 | 0.58 | | GL (cm) | CK | 0.81 | 1.82 | 1.43 | 0.17 | 0.12 | | ST | 0 | 0.71 | 0.02 | 0.10 | — | | RL (cm) | CK | 0.58 | 11.80 | 7.49 | 1.95 | 0.26 | | ST | 0.20 | 6.22 | 1.00 | 0.93 | 0.93 | | FWG (mg) | CK | 7.60 | 194.00 | 20.61 | 22.68 | 1.10 | | ST | 0 | 82.00 | 0.14 | 0.81 | 5.79 | | FWR (mg) | CK | 21.00 | 142.22 | 67.60 | 19.64 | 0.29 | | ST | 0 | 82.00 | 8.43 | 9.05 | 1.07 | | DWG (mg) | CK | 0.20 | 4.70 | 2.37 | 0.71 | 0.30 | | ST | 0 | 0.56 | 0.01 | 0.06 | 6.91 | | DWR (mg) | CK | 1.30 | 8.80 | 4.73 | 1.41 | 0.30 | | ST | 0 | 6.60 | 0.66 | 0.72 | 1.08 | | GI | CK | 6.57 | 14.29 | 9.84 | 2.24 | 0.23 | | ST | 0 | 9.62 | 1.74 | 1.54 | 0.88 | | VI | CK | 281.90 | 1087.26 | 682.23 | 316.31 | 0.46 | | ST | 0 | 239.32 | 19.76 | 33.19 | 1.68 |
View table in article
表2
110份小豆种质资源盐处理组和对照组生长指标的描述性统计分析
正文中引用本图/表的段落
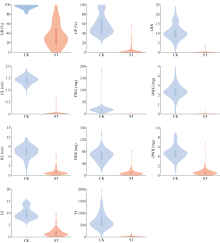
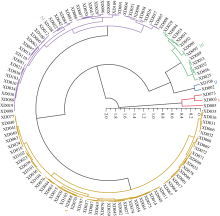
在盐处理与对照条件下, 供试小豆种质的11个性状变化差异显著(表2)。在对照处理中, 各性状的变异范围较广。例如, 发芽势、侧根数和胚芽长的变异范围分别为36.70%~100.00%、2.00~23.00条和0.81~1.82 cm, 而在盐处理组中这些性状的变化范围分别为0~56.70%、0~4.00条、0~0.71 cm。由图1可知, 对照各指标分布较分散, 体现正常生长状态。相较于对照, 盐处理下性状数值范围大幅收缩, 所有性状均受到明显抑制, 但抑制程度存在差异, 胚芽干重下降99.58% (最严重), 发芽率下降62.52% (影响最小)。以上结果表明, 盐处理显著抑制小豆生长发育, 且不同品种响应不同, 使用单一指标难以全面评价其耐盐性, 这一结论在数据差异与分布特征中均得到验证。
缩写同表2。CK: 对照; ST: 盐处理。
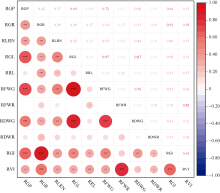
盐处理下, 小豆参试材料11个性状相对值的相关性分析表明(图2), 相对发芽势与相对发芽率、相对侧根数、相对胚芽长、相对胚芽鲜重、相对胚芽干重、相对发芽指数和相对活力指数呈极显著正相关; 相对发芽率与相对侧根数、相对胚芽长、相对胚根长、相对胚芽鲜重、相对胚芽干重、相对发芽指数、相对活力指数呈极显著正相关; 相对侧根数与相对胚芽长、相对胚芽鲜重、相对胚芽干重、相对发芽指数和相对活力指数呈极显著正相关; 相对胚芽长与相对胚芽鲜重、相对胚芽干重、相对发芽指数和相对活力指数呈显著正相关; 相对胚根长与相对发芽指数、相对活力指数呈极显著正相关; 相对胚芽鲜重与相对胚芽干重、相对发芽指数和相对活力指数呈极显著正相关; 相对胚根鲜重与相对活力指数呈极显著正相关; 相对胚芽干重与相对发芽指数呈极显著正相关; 相对胚根干重与相对发芽指数和相对活力指数呈极显著正相关; 相对发芽指数与相对活力指数呈极显著正相关。以上结果表明, 盐胁迫下各生长指标间存在着显著的关联性, 导致对参试材料进行耐盐性评价时各指标之间存在信息冗余。
在相关性分析的基础上, 利用主成分分析方法可以筛选出具有代表性的综合评价指标。各主成分因子的特征值、对原始指标的载荷矩阵和对表型的贡献率如表3所示。结果表明, 主成分1的贡献率为44.54%, 与相对胚芽长、相对发芽指数和相对胚芽鲜重相关性最大, 表明该主因子主要反映了胚芽的生长状况及萌发情况; 主成分2的贡献率为18.30%, 与相对胚根鲜重的相关性最大, 说明该主因子能够较好地反映小豆胚根生长的状况; 主成分3的贡献率为9.61%, 与相对胚根鲜重的相关性最大, 表明该主因子主要反映了胚根的生长情况。前3个主成分的累计方差贡献率达到70%以上, 说明这3个主成分基本代表了这11个性状的信息量。因此, 这11个指标可简化为3个综合指标, 用于小豆种质资源的耐盐性综合评价分析。
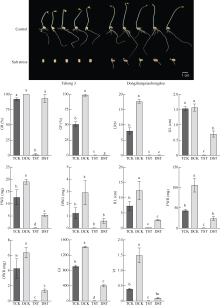
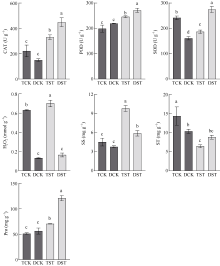
为揭示耐盐与盐敏感品种的生理响应差异, 以筛选出的东掌小红豆(高耐盐)和特红3号(盐敏感)为材料, 采用70 mmol L-1 NaCl溶液对2个品种进行了7 d的浸种试验, 测定发芽表型及生理生化指标。结果表明, 在对照条件下, 2个品种之间的发芽表型性状差异不明显; 在盐胁迫下, 2个品种的所有发芽表型指标均下降, 但特红3号的下降幅度大于东掌小红豆(图4)。在盐胁迫处理后, 2个品种的过氧化氢酶(CAT)、过氧化物酶(POD)活性和可溶性糖(SS)、脯氨酸(Pro)含量均较对照组升高(图5), 在这些指标中, 除可溶性糖外, 其他指标均为东掌小红豆上升幅度大于特红3号。东掌小红豆的超氧化物歧化酶(SOD)活性在盐胁迫后显著升高, 特红3号则显著降低。东掌小红豆的过氧化氢(H2O2)含量在盐处理后基本维持不变, 而特红3号显著升高。淀粉(ST)含量在东掌小红豆中无显著变化, 在特红3号中显著降低。综合各项生理生化指标, 2个品种在盐胁迫下表现出不同的生理调控策略, 东掌小红豆的抗氧化能力和渗透调节能力均优于特红3号, 更能适应盐胁迫环境。
缩写同表2。TCK: 特红3号对照组; DCK: 东掌小红豆对照组; TST: 特红3号盐处理组; DST: 东掌小红豆盐处理组。不同小写字母表示组间差异显著(P < 0.05) (n = 3)。比例尺为1 cm。
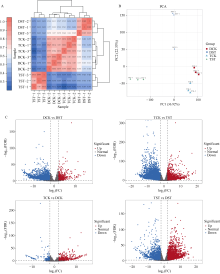
为从分子水平解析东掌小红豆与特红3号的耐盐差异机制, 进一步对2个品种的对照组与盐处理组进行转录组测序分析。重复样本表现出良好的组内重复性和清晰的组间分离(图6-A, B)。主成分分析(PCA)结果显示, 各处理组间存在明显聚类。第1主成分(PC1)和第2主成分(PC2)分别解释了36.92%和22.33%的变异(图6-B)。转录组测序检测到大量差异表达基因(DEGs), 且2个品种间的差异表达基因数量存在显著差异(图6-C)。其中, 2个品种对照组共鉴定出841个差异表达基因(617个上调, 224个下调)。耐盐品种东掌小红豆在对照组和盐处理组中鉴定出3801个差异表达基因(675个上调, 3126个下调)。盐敏感品种特红3号在对照组和盐处理组中鉴定出的差异表达基因的数量显著增加, 达到7811个(2657个上调, 5154个下调)。而在2个品种盐处理组比较中, 共识别出5863个差异表达基因(3405个上调, 2458个下调)。
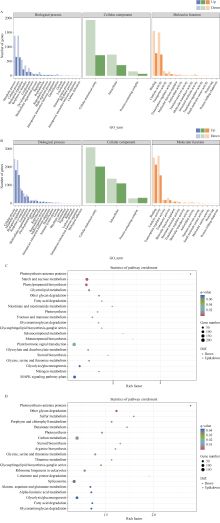
为评估差异表达基因的功能, 本研究对2个品种在芽期盐胁迫下的差异表达基因进行GO与KEGG富集分析。GO分析显示(附图1-A, B), 差异表达基因多集中在生物学过程中的代谢过程(metabolic process)、细胞过程(cellular process)、生物学调节(biological regulation), 细胞组分中的细胞解剖实体(cellular anatomical entity), 分子功能中的催化活性(catalytic activity)、结合(binding), 表明差异表达基因广泛参与了多种代谢和调控过程。KEGG通路富集分析进一步显示(附图1-C, D), 2个品种富集的代谢通路存在明显差异, DCK vs DST主要特异性富集在淀粉和蔗糖代谢(starch and sucrose metabolism)、苯丙烷生物合成(phenylpropanoid biosynthesis)、甘油酯代谢(glycerolipid metabolism)途径中; TCK vs TST主要特异性富集在硫代谢(sulfur metabolism)、卟啉与叶绿素代谢(porphyrin and chlorophyll metabolism)、丁酸代谢(butanoate metabolism)途径中。其中, 淀粉和蔗糖代谢通路中富集的差异基因数量最多且显著性最高。因此, 淀粉和蔗糖代谢通路可能是调控小豆芽期耐盐性的关键通路。
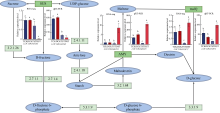
基于差异表达基因和KEGG富集结果分析, 从淀粉和蔗糖代谢通路中筛选出3个在东掌小红豆和特红3号的对照组中表达差异不显著, 而在盐处理后表达差异显著的基因。这3个基因分别为蔗糖合酶基因(LOC108343245)、α-淀粉酶基因(LOC108346293)和4-α-葡聚糖转移酶基因(LOC108331871)。它们在淀粉和蔗糖代谢通路中的位置及催化关系如图7所示。转录组表达分析及qRT-PCR验证结果显示(图7), 3个基因在2个品种中呈现出不同的表达模式。在盐处理后, 蔗糖合酶(sucrose synthase, SUS)基因在2个品种中均下调, 东掌小红豆下调为对照的0.15倍, 特红3号下调为对照的0.72倍, 前者下调更显著(P < 0.05); α-淀粉酶(α-amylase, AMY)基因仅在东掌小红豆中显著上调, 在特红3号中无显著变化。4-α-葡聚糖转移酶(4-α-glucanotransferase, malQ)基因在东掌小红豆中显著上调, 上调为对照的1.6倍, 在特红3号中则是显著下调, 为对照的0.18倍。以上结果表明, 耐盐品种东掌小红豆通过下调SUS基因、上调AMY基因和malQ基因响应盐胁迫; 而盐敏感品种特红3号则表现为SUS基因下调(但下调幅度小于东掌小红豆)、AMY基因无显著变化、malQ基因下调。这表明2个品种在淀粉和蔗糖代谢通路的分子调控上存在显著差异, 这可能是导致二者耐盐性差异的重要原因之一。
植物耐盐性的生理生化适应机制核心围绕氧化应激抵御与渗透调节平衡2大关键路径展开, 通过多维度协同响应缓解盐胁迫损伤[25-26]。在氧化应激层面, 盐胁迫会打破植物细胞内活性氧(reactive oxygen species, ROS)的产生与清除平衡, 过量积累的超氧阴离子、过氧化氢等ROS会攻击生物膜、蛋白质和核酸等生物大分子, 引发膜脂过氧化、蛋白质变性等氧化损伤[27-28]。对此, 耐盐植物会启动酶促与非酶促抗氧化系统: 酶促系统中, 过氧化氢酶(CAT)、过氧化物酶(POD)、超氧化物歧化酶(SOD)等抗氧化酶活性显著提升, 通过分级协作高效清除ROS [29-30]; 非酶促系统则通过积累谷胱甘肽、类黄酮、抗坏血酸等抗氧化物质, 直接清除自由基或参与酶促反应的电子传递, 共同维持细胞内氧化还原稳态, 减轻氧化损伤[31]。在渗透调节层面, 盐胁迫导致的细胞外高渗透压会引发细胞失水, 耐盐植物通过主动积累脯氨酸、可溶性糖、甜菜碱等相容性渗透调节物质, 来提升细胞内渗透压以维持细胞膨压, 促进水分吸收与保留[32]。在烟草中, 通过提高抗氧化能力, 帮助转基因烟草植株克服了盐胁迫, 在盐胁迫下存活时间更长, 胁迫解除后恢复能力更强, 光合效率、发芽率、叶绿素含量、总抗氧化酶活性、保水能力、脯氨酸积累均得到提升, 丙二醛含量和活性氧积累下降[33]。Aycan等[34]通过对16个普通小麦品种在苗期施加0 mmol L-1和15 mmol L-1 NaCl溶液胁迫处理, “Ikizce-96”和“Demir-2000”品种表现出更高的耐盐性, 其形态生理参数降幅最小, 表现出更高的脯氨酸含量和更强的抗氧化酶活性。本研究中, 耐盐品种东掌小红豆在盐胁迫下能够迅速激活其抗氧化系统, 特别是过氧化氢酶(CAT)活性显著增强, 从而有效地清除了过氧化氢(H2O2), 维持了细胞的氧化还原稳态, 此外, 通过积极积累脯氨酸(Pro)和可溶性糖(SS)等相容性溶质, 有效降低了细胞水势, 保障了水分吸收和细胞膨胀, 为各种生理代谢活动的正常进行提供了基础。相比之下, 盐敏感品种特红3号的抗氧化能力较弱, 渗透调节物质的合成与积累存在明显不足, 导致ROS积累, 引发膜脂过氧化等氧化损伤。这些生理层面的显著差异共同证明了强大的抗氧化防御能力和高效的渗透调节能力是东掌小红豆耐受盐胁迫的核心生理基础。
本文的其它图/表
|