欢迎访问作物学报,今天是
作物学报 ›› 2024, Vol. 50 ›› Issue (10): 2654-2664.doi: 10.3724/SP.J.1006.2024.41008
• 研究简报 • 上一篇
赵阳1,2( ), 李龙2, 杨进文1, 景蕊莲2, 孙黛珍1,*(), 王景一2,*()
ZHAO Yang1,2(), LI Long2, YANG Jin-Wen1, JING Rui-Lian2, SUN Dai-Zhen1,*(), WANG Jing-Yi2,*()
摘要:
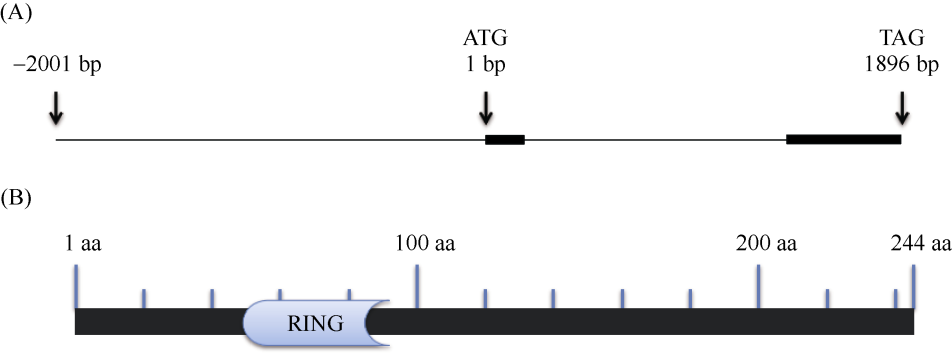
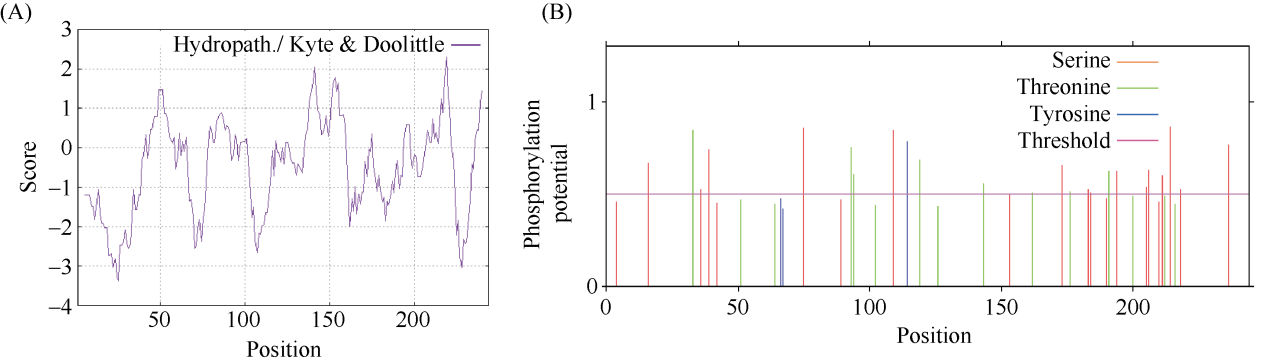
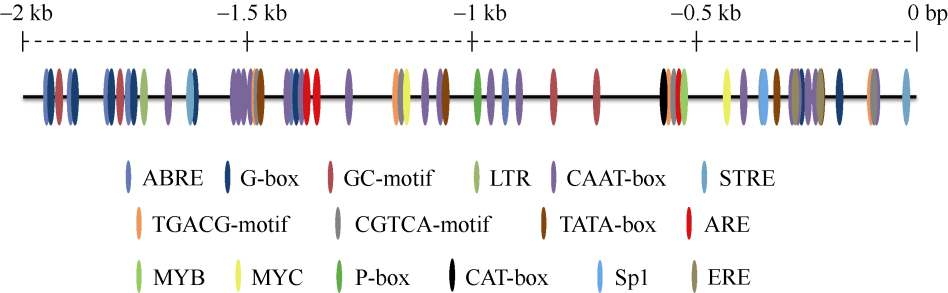
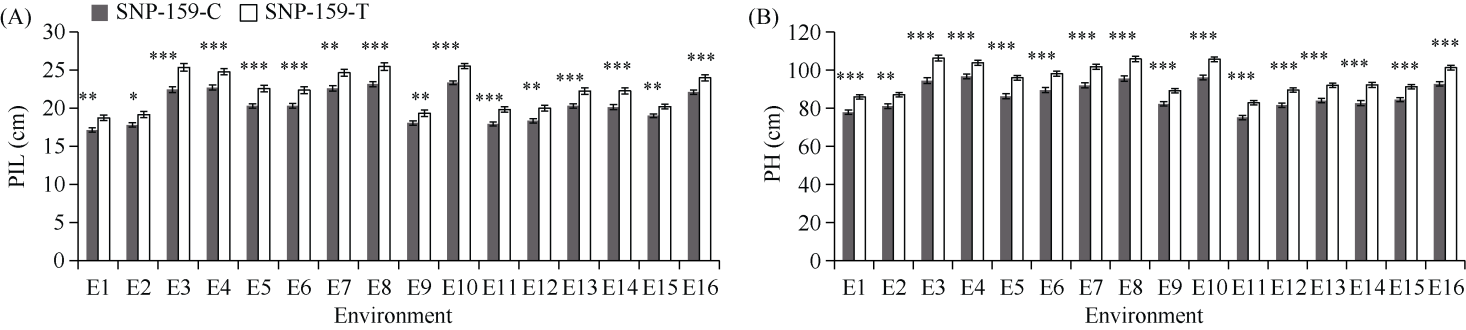
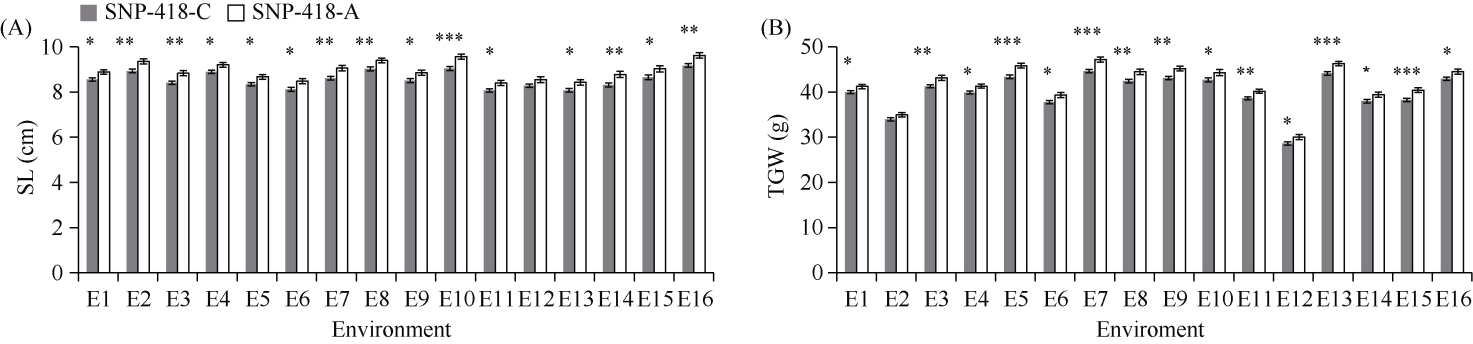
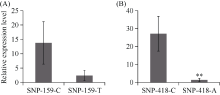
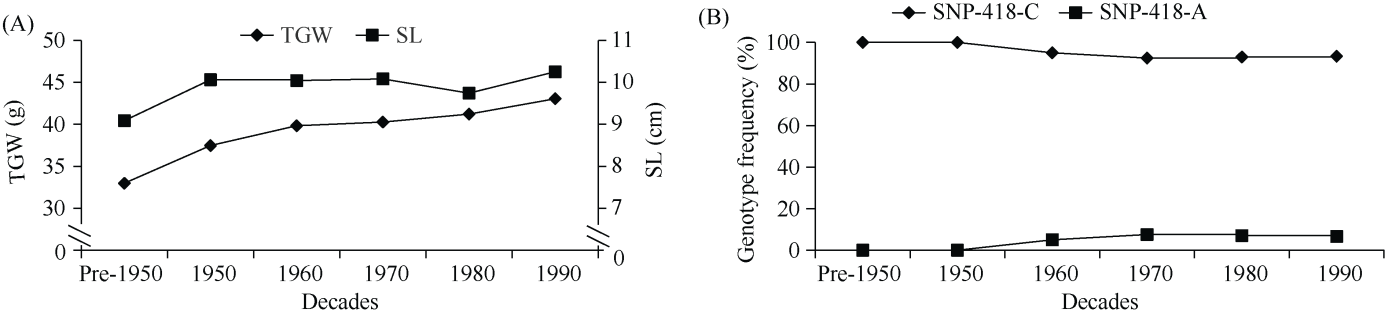
E3泛素连接酶SINA (seven in absentia)家族参与植物的生长发育、免疫共生并响应逆境胁迫。本研究克隆了位于小麦染色体3A上的TaSINA-3A基因, 其基因组序列长度为3897 bp, 其中启动子区为2001 bp, 基因序列为1896 bp, 编码244个氨基酸, 在50~91位氨基酸处有一个RING (really interesting new gene)保守结构域。RT-qPCR结果显示, TaSINA-3A基因在小麦的各个发育阶段的不同组织中均有表达。序列多态性分析表明, 在TaSINA-3A的启动子区存在33个SNP (single nucleotide polymorphism)位点, 编码区有4个SNP位点。基于启动子区的变异位点SNP-159、SNP-418和SNP-1286开发分子标记, 扫描小麦自然群体, 并与表型性状进行关联分析。结果表明,标记CAPS-159与多种环境下的株高和倒二节长显著相关, SNP-159-C是倒二节较短的矮秆等位变异, 标记dCAPS-418分别与多种环境下的穗长和千粒重显著关联, SNP-418-A是长穗、高千粒重的优异等位变异; TaSINA-3A负调控穗和籽粒的发育, TaSINA-3A的表达可能受到MYC转录因子的抑制; 在我国小麦育种进程中SNP-418-A受到正向选择, 在育成品种中的频率逐步增加, 但尚未充分利用。研究结果为深入探讨小麦株高、倒二节长及产量的形成机制提供参考, 并为培育高产稳产广适新品种提供了基因资源。
| [1] | Erenstein O, Jaleta M, Mottaleb K A, Sonder K, Donovan J, Braun H J. Global Trends in Wheat Production, Consumption and Trade. Berlin: Springer International Publishing Cham, 2022. pp 47-66. |
| [2] |
Hedden P. The genes of the green revolution. Trends Genet, 2003, 19: 5-9.
doi: 10.1016/s0168-9525(02)00009-4 pmid: 12493241 |
| [3] |
Koppolu R, Schnurbusch T. Developmental pathways for shaping spike inflorescence architecture in barley and wheat. J Integr Plant Biol, 2019, 61: 278-295.
doi: 10.1111/jipb.12771 |
| [4] |
Cao S H, Xu D A, Hanif M, Xia X C, He Z H. Genetic architecture underpinning yield component traits in wheat. Theor Appl Genet, 2020, 133: 1811-1823.
doi: 10.1007/s00122-020-03562-8 pmid: 32062676 |
| [5] | Wang J P, Li C N, Mao X G, Wang J Y, Li L, Li J L, Fan Z P, Zhu Z, He L H, Jing R L. The wheat basic helix-loop-helix gene TabHLH123 positively modulates the formation of crown roots and is associated with plant height and 1000-grain weight under various conditions. J Exp Bot, 2023, 74: 2542-2555. |
| [6] |
姚琦馥, 周界光, 王健, 陈黄鑫, 杨瑶瑶, 刘倩, 闫磊, 王瑛, 周景忠, 崔凤娟, 蒋云, 马建. 小麦穗长QTL鉴定及其遗传分析. 中国农业科学, 2023, 56: 4814-4825.
doi: 10.3864/j.issn.0578-1752.2023.24.002 |
|
Yao Q F, Zhou J G, Wang J, Chen H X, Yang Y Y, Liu Q, Yan L, Wang Y, Zhou J Z, Cui F J, Jiang Y, Ma J. Identification and genetic analysis of QTL for spike length in wheat. Sci Agric Sin, 2023, 56: 4814-4825 (in Chinese with English abstract).
doi: 10.3864/j.issn.0578-1752.2023.24.002 |
|
| [7] |
董继梓, 陈林渠, 郭浩儒, 张梦宇, 刘志霄, 韩磊, 田赵飒爽, 徐宁浩, 郭庆杰, 黄振洁, 杨傲宇, 赵春华, 吴永振, 孙晗, 秦冉, 崔法. 小麦穗长主效QTL-qSl-2D的遗传和育种选择效应解析. 中国农业科学, 2023, 56: 3917-3930.
doi: 10.3864/j.issn.0578-1752.2023.20.001 |
| Dong J Z, Chen L Q, Guo H R, Zhang M Y, Liu Z X, Han L, Tian Z S S, Xu N H, Guo Q J, Huang Z J, Yang A Y, Zhao C H, Wu Y Z, Sun H, Qin R, Cui F. Analysis of genetic and breeding selection effects of a major QTL-qSl-2D for wheat spike length. Sci Agric Sin, 2023, 56: 3917-3930 (in Chinese with English abstract). | |
| [8] | 张有富. TaTAP46基因对小麦千粒重和籽粒大小的影响. 甘肃农业大学博士学位论文, 甘肃兰州, 2021. |
| Zhang Y F. Effect of TaTAP46 Gene on Thousand Kernel Weight and Kernel Size in Wheat. PhD Dissertation of Gansu Agricultural University, Lanzhou, Gansu, China, 2021 (in Chinese with English abstract). | |
| [9] | Vierstra R D. The ubiquitin-26S proteasome system at the nexus of plant biology. Nat Rev Mol Cell Biol, 2009, 10: 385-397. |
| [10] | Xu F Q, Xue H W. The ubiquitin-proteasome system in plant responses to environments. Plant Cell Environ, 2019, 42: 2931-2944. |
| [11] | 田爱梅, 于晖, 曹家树. 植物E3泛素连接酶的分类与功能. 中国细胞生物学学报, 2020, 42: 907-915. |
| Tian A M, Yu H, Cao J S. Classification and function of E3 ubiquitin ligase in plants. Chin J Cell Biol, 2020, 42: 907-915 (in Chinese with English abstract). | |
| [12] |
Sun J Q, Huang S Y, Lu Q, Li S, Zhao S Z, Zheng X J, Zhou Q, Zhang W X, Li J, Wang L L, Zhang K, Zheng W Y, Feng X Z, Liu B H, Kong F J, Xiang F N. UV-B irradiation-activated E3 ligase GmILPA1 modulates gibberellin catabolism to increase plant height in soybean. Nat Commun, 2023, 14: 6262.
doi: 10.1038/s41467-023-41824-3 pmid: 37805547 |
| [13] | Zhang J L, Li C N, Li L, Xi Y J, Wang J Y, Mao X G, Jing R L. RING finger E3 ubiquitin ligase gene TaAIRP2-1B controls spike length in wheat. J Exp Bot, 2023, 74: 5014-5025. |
| [14] | Wang J Y, Wang R T, Mao X G, Zhang J L, Liu Y N, Xie Q, Yang X Y, Chang X P, Li C N, Zhang X Y, Jing R L. RING finger ubiquitin E3 ligase gene TaSDIR1-4A contributes to determination of grain size in common wheat. J Exp Bot, 2020, 71: 5377-5388. |
| [15] | Zhang C Y, Hao Z Y, Ning Y S, Wang G L. SINA E3 ubiquitin ligases: versatile moderators of plant growth and stress response. Mol Plant, 2019, 12: 610-612. |
| [16] | Li L, Peng Z, Mao X G, Wang J Y, Chang X P, Reynolds M, Jing R L. Genome-wide association study reveals genomic regions controlling root and shoot traits at late growth stages in wheat. Ann Bot, 2019, 124: 993-1006. |
| [17] | Hao C Y, Wang L F, Ge H M, Dong Y C, Zhang X Y. Genetic diversity and linkage disequilibrium in Chinese bread wheat (Triticum aestivum L.) revealed by SSR markers. PLoS One, 2011, 6: e17279. |
| [18] | Li L, Mao X G, Wang J Y, Chang X P, Reynolds M, Jing R L. Genetic dissection of drought and heat-responsive agronomic traits in wheat. Plant Cell Environ, 2019, 42: 2540-2553. |
| [19] | Xie Q, Guo H S, Dallman G, Fang S, Weissman A M, Chua N H. SINAT5 promotes ubiquitin-related degradation of NAC1 to attenuate auxin signals. Nature, 2002, 419: 167-170. |
| [20] |
Nolan T M, Brennan B, Yang M R, Chen J N, Zhang M C, Li Z H, Wang X L, Bassham D C, Walley J, Yin Y H. Selective autophagy of BES1 mediated by DSK2 balances plant growth and survival. Dev Cell, 2017, 41: 33-46.
doi: S1534-5807(17)30166-1 pmid: 28399398 |
| [21] | Yang M R, Li C X, Cai Z Y, Hu Y M, Nolan T, Yu F F, Yin Y H, Xie Q, Tang G L, Wang X L. SINAT E3 ligases control the light-mediated stability of the brassinosteroid-activated transcription factor BES1 in Arabidopsis. Dev Cell, 2017, 41: 47-58. |
| [22] |
Ning Y S, Jantasuriyarat C, Zhao Q Z, Zhang H W, Chen S B, Liu J L, Liu L J, Tang S Y, Park C H, Wang X J, Liu X L, Dai L Y, Xie Q, Wang G L. The SINA E3 ligase OsDIS1 negatively regulates drought response in rice. Plant Physiol, 2011, 157: 242-255.
doi: 10.1104/pp.111.180893 pmid: 21719639 |
| [23] |
Bao Y, Wang C T, Jiang C M, Pan J, Zhang G B, Liu H, Zhang H X. The tumor necrosis factor receptor-associated factor (TRAF)-like family protein SEVEN IN ABSENTIA 2 (SINA2) promotes drought tolerance in an ABA-dependent manner in Arabidopsis. New Phytol, 2014, 202: 174-187.
doi: 10.1111/nph.12644 pmid: 24350984 |
| [24] | Xue Y H, Wang J Y, Mao X G, Li C N, Li L, Yang X, Hao C Y, Chang X P, Li R Z, Jing R L. Association analysis revealed that TaPYL4 genes are linked to plant growth related traits in multiple environments. Front Plant Sci, 2021, 12: 641087. |
| [25] |
范子培, 李龙, 史雨刚, 孙黛珍, 李超男, 景蕊莲. 小麦TabHLH112-2B基因克隆及每穗小穗数相关功能标记开发. 作物学报, 2024, 50: 403-413.
doi: 10.3724/SP.J.1006.2024.31016 |
| Fan Z P, Li L, Shi Y G, Sun D Z, Li C N, Jing R L. Cloning of TabHLH112-2B gene and development of its functional marker associated with the number of spikelets per spike in wheat. Acta Agron Sin, 2024, 50: 403-413 (in Chinese with English abstract). | |
| [26] | Gao C H, Qi S H, Liu K G, Li D, Jin C Y, Li Z W, Huang G Q, Hai J B, Zhang M, Chen M X. MYC2, MYC3, and MYC4 function redundantly in seed storage protein accumulation in Arabidopsis. Plant Physiol Biochem, 2016, 108: 63-70. |
| [27] | Wang W J, Fan Y H, Niu X L, Miao M, Kud J, Zhou B J, Zeng L R, Liu Y S, Xiao F M. Functional analysis of the seven in absentia ubiquitin ligase family in tomato. Plant Cell Environ, 2018, 41: 689-703. |
| [28] |
Kim J H, Khan I U, Lee C W, Kim D Y, Jang C S, Lim S D, Park Y C, Kim J H, Seo Y W. Identification and analysis of a differentially expressed wheat RING-type E3 ligase in spike primordia development during post-vernalization. Plant Cell Rep, 2021, 40: 543-558.
doi: 10.1007/s00299-020-02651-8 pmid: 33423075 |
| [29] | Lyu Q, Li L Q, Meng Y, Sun H M, Chen L P, Wang B X, Li X J. Wheat E3 ubiquitin ligase TaGW2-6A degrades TaAGPS to affect seed size. Plant Sci, 2022, 320: 111274. |
| [30] | 李淑敏. 泛素E3连接酶TaGW2调控小麦抗逆性的分子机制研究. 西北农林科技大学博士学位论文, 陕西杨凌, 2023. |
| Li S M. The Molecular Mechanism of E3 Ubiquitin Ligase TaGW2 in Regulating Wheat Stress Resistance. PhD Dissertation of Northwest Agriculture and Forestry University, Yangling, Shaanxi, China, 2023 (in Chinese with English abstract). |
| [1] | 翟胜男, 曹新有, 李豪圣, 李吉虎, 李法计, 刘金栋, 夏先春, 吕莹莹, 马瑞峰, 王颖, 耿洪伟, 刘建军. 小麦Pod-A1、Pod-D1和Pod-2D位点等位变异对籽粒过氧化物酶活性的遗传效应分析[J]. 作物学报, 2026, 52(6): 1593-1603. |
| [2] | 习千辉, 徐梓瑗, 刘梦梦, 王宏艺, 郎凯琳, 井震海, 陈锋, 赵磊. 小麦籽粒铜含量的全基因组关联分析及候选基因预测[J]. 作物学报, 2026, 52(6): 1604-1617. |
| [3] | 毛嘉琦, 黄朋雨, 赵佳佳, 郑兴卫, 武棒棒, 郝宇琼, 屈非, 刘成, 马朋涛, 郑军. 山西小麦品种白粉病抗性评价及抗病基因分子检测[J]. 作物学报, 2026, 52(6): 1669-1681. |
| [4] | 彭佳泺, 李颖, 李丹丹, 杨军宁, 郭学峰, 张文姣, 俞晓雪, 周亚荣, 王振玉, 王彩香, 马雄风, 宿俊吉. 陆地棉I类LBD家族成员鉴定及GhLBD6调控开花期的功能和单倍型分析[J]. 作物学报, 2026, 52(6): 1682-1697. |
| [5] | 唐宽强, 李公允, 宋美毅, 赵雪, 常春玲. 大豆株高性状全基因组关联分析及预测模型构建[J]. 作物学报, 2026, 52(6): 1743-1756. |
| [6] | 张献丰, 郭利建, 李康春, 孔斌雪, 刘玉芳, 车卓, 杨德龙. 小麦ABHD6基因家族鉴定与粒重功能标记开发[J]. 作物学报, 2026, 52(6): 1711-1727. |
| [7] | 杨欣雨, 崔文涛, 迪力尼格尔·阿力木, 汪凯翔, 吴鹏昊, 任姣姣. 玉米穗上叶片数全基因组关联分析和全基因组选择[J]. 作物学报, 2026, 52(5): 1573-1590. |
| [8] | 闫安, 蒋昆炜, 王蓉圆, 田林, 张璐, 王韵, 徐建龙. 水稻剑叶小维管束数基因SVN7的鉴定与克隆[J]. 作物学报, 2026, 52(5): 1364-1372. |
| [9] | 王楚锐, 李开祥, 赵志, 肖麓, 唐国永, 赵志刚, 徐亮, 杜德志, 柳海东. 甘蓝型春油菜早花基因BnCRY2功能位点KASP标记的开发及应用[J]. 作物学报, 2026, 52(3): 708-721. |
| [10] | 张超, 郭欢, 李忠玲, 岳淑宁, 赵娜. 基于BSA-seq技术定位玉米籽粒花青素关联基因[J]. 作物学报, 2026, 52(3): 780-789. |
| [11] | 王粤生, 葛冬冬, 程兰斐, 陈春环, 王长有, 刘新伦, 李停栋, 邓平川, 吉万全, 赵继新. 小麦-华山新麦草二体异代换系16DH25-7的分子细胞遗传学及抗病性鉴定[J]. 作物学报, 2026, 52(2): 433-445. |
| [12] | 鲁雅妮, 丁超杰, 张煜, 杜习军, 齐学礼, 胡琳, 许为钢. 河南省200份小麦品种苗期茎基腐病抗性鉴定与全基因组关联分析[J]. 作物学报, 2026, 52(2): 363-375. |
| [13] | 李诗晴, 王茜, 王素华, 张耀文, 王丽侠. 绿豆种质资源苗期耐盐性鉴定及相关基因发掘[J]. 作物学报, 2026, 52(2): 376-388. |
| [14] | 李云香, 郭千纤, 侯万伟, 张小娟. 引进ICARDA小麦苗期根系抗旱性状的全基因组关联分析[J]. 作物学报, 2025, 51(9): 2387-2398. |
| [15] | 李璐琪, 程宇坤, 白斌, 雷斌, 耿洪伟. 小麦叶片气孔相关性状全基因组关联分析[J]. 作物学报, 2025, 51(9): 2266-2284. |
|
||